
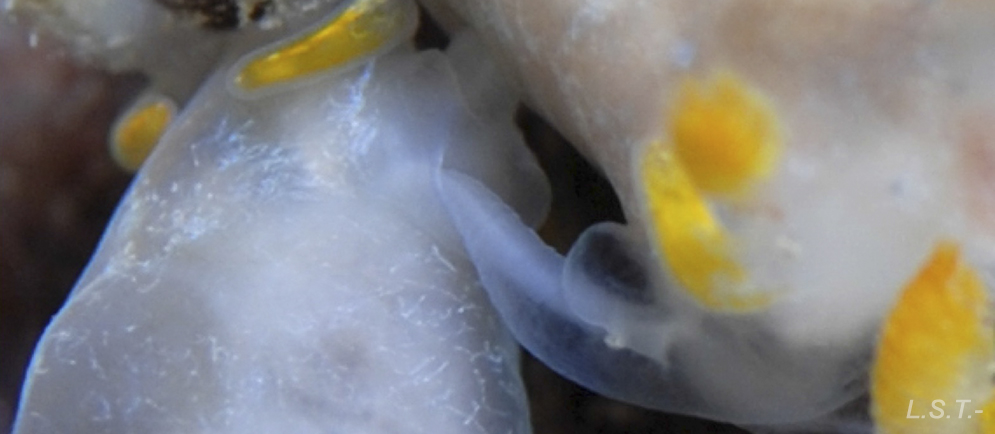

Los "opistobranquios" (Heterobranquios) son hermafroditas simultáneos. Sus sistemas reproductores son muy variables y especializados. realizando las siguientes funciones " producción de gametos, transferencia y maduración de gametos en varios órganos, cópula, fertilización y producción de la masa de huevos.” (Valdes et al. 2010).
El sistema reproductor ancestral, según Ghiselin (1966), es de tipo monáulico, con un sólo gonoducto. Éste se inicia con un conducto hermafrodita al que le sigue una ampolla, donde el ejemplar guarda sus espermatozoides durante un corto periodo de tiempo, encontrandose a continuación el receptáculo seminal ( lugar de almacenamiento de los espermatozoides externos después de la cópula y durante un periodo largo de tiempo). A continuacion la glandula femenina, donde los óvulos ya fecundados son cubiertos por diferentes capas protectoras para salir al exterior a traves del gonoporo. A éste está asociado la bolsa copulatriz, que recoge el esperma durante la cópula, y de el parte un conducto (canal espermático externo) que termina en un pene no protusible y por el que circulan sus espermatozoides. Este es el tipo monáulico más primitivo y sólo se conserva en el género Tylodina (Valdes et al. 2010).
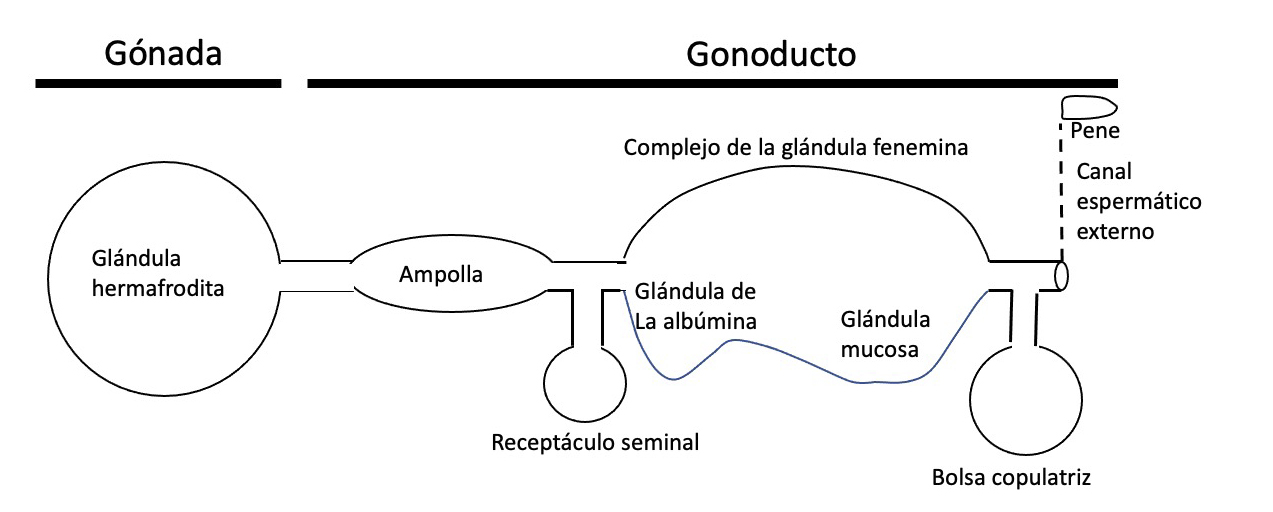
Otros tipos de sistemas reproductores son el diáulico y el triáulico. El primero de ellos puede ser de dos tipos (Ghiselin, 1966): androdiáulico en donde tenemos por un lado el conducto deferente y por otro el oviducto y conducto vaginal como un sólo conducto (por ejemplo Acteon)
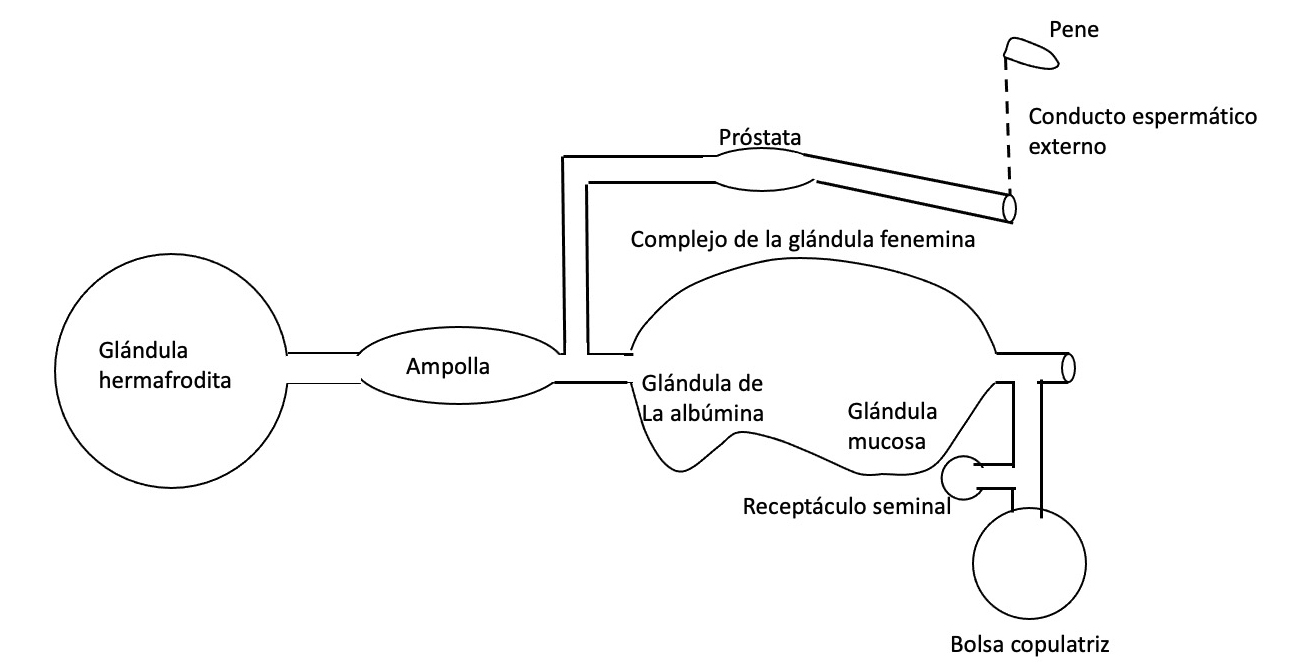
Y oodiáulico en donde hay un oviducto separado (caso de Aplysia).
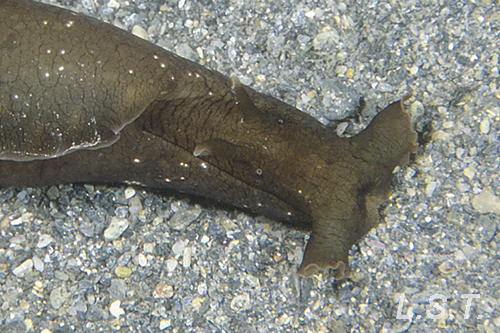
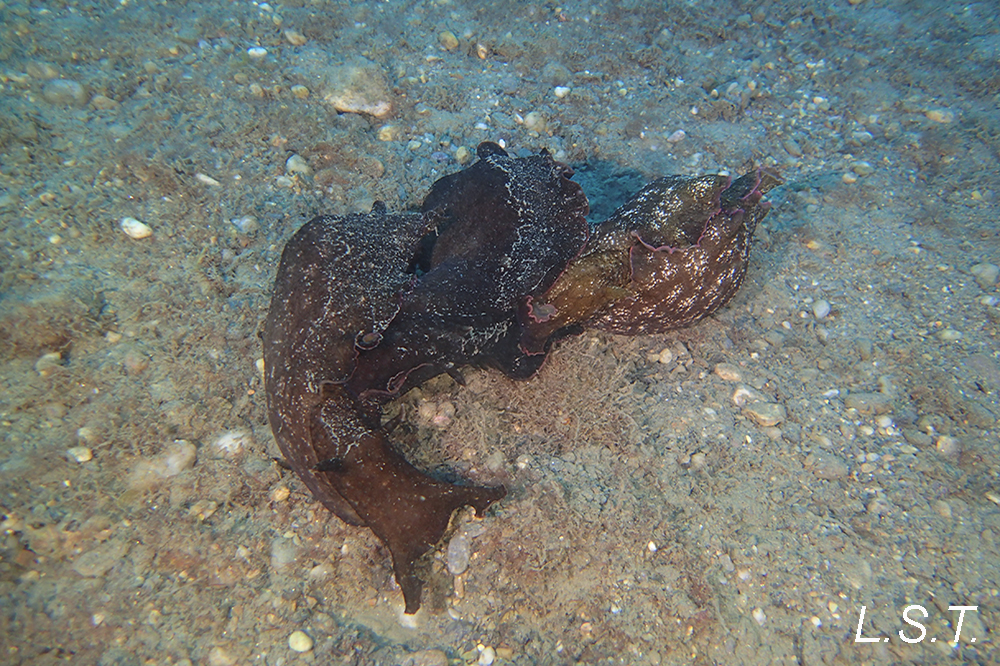
En las liebres de mar (Aplysia), gracias a presentar un sistema reproductor de tipo oodiáulico, varios individuos pueden copular a la vez formando una cadena, como podemos ven en las siguientes imágenes. El atrio genital se encuentra situado en la parte dorsal y de él parte un canal hacia la parte anterior derecha de la cabeza en donde se encuentra el pene.
|
|
|
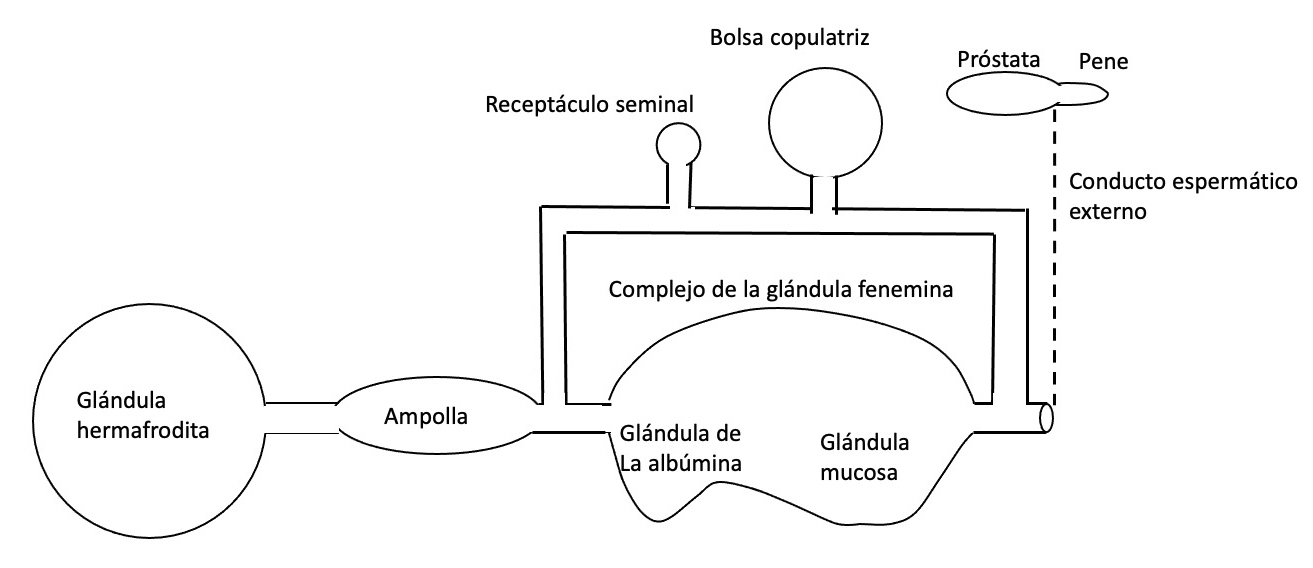
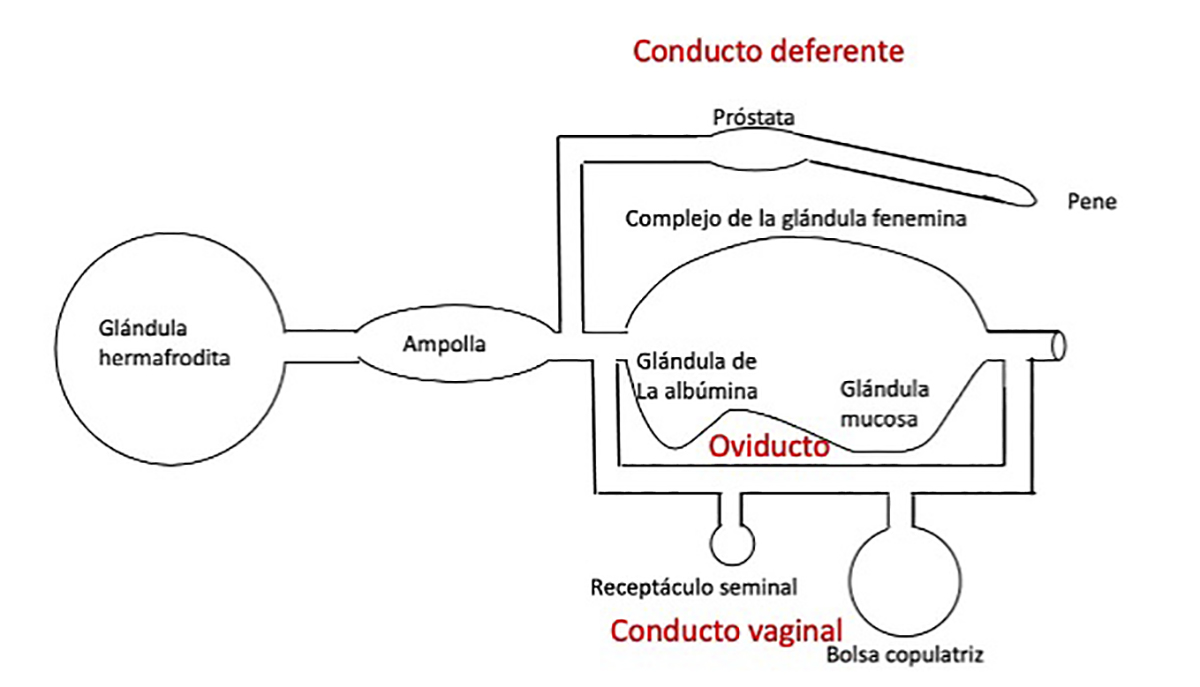
El sistema reproductor triáulico poseetres conductos separados (figura inferior): el conducto deferente (parte superior con la próstata y que finaliza en el pene), el oviducto (en el centro con la glándula femenina) y el conducto vaginal (inferior con la bolsa copulatriz y el receptáculo seminal)
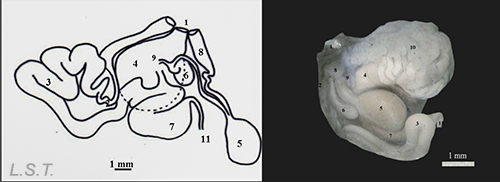
Durante la cópula los individuos se sitúan dependiendo de la posición del poro o atrio genital. En el caso de los Doridida y Nudibranchia está situado en la parte anterior derecha, por lo que los individuos se disponen para la cópula, más o menos, enfrentados y presentando ese lado.
Dos ejemplares de Trapania lineata copulando sobre la esponja Sarcotragus spinosulus. En el de la izquierda se observa por transparencia un copépodo parásito y entre las branquias la puesta de éste. (Secuencia acelerada x3)
|
|
|
|
|
|
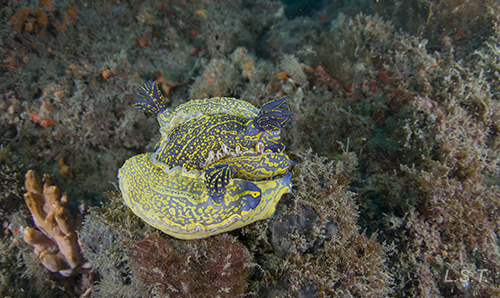
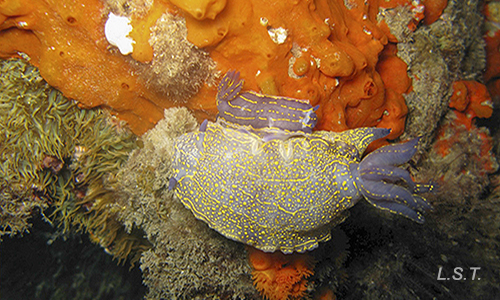
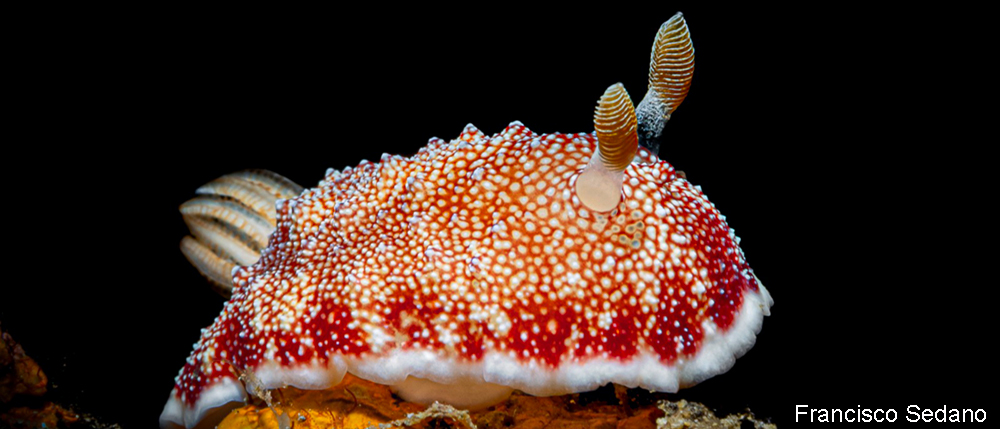
Una especie de Doridida, Goniobranchus reticulatus, presenta un comportamiento reproductor especialmente singular: al finalizar la cópula, una parte del pene se desprende y el animal necesita aproximadamente un día para regenerarla antes de poder copular de nuevo. La presencia de esperma en las pequeñas espinas orientadas hacia atrás del fragmento de pene autotomizado podría indicar que el ejemplar extrae esperma de individuos que copularon previamente con su pareja, almacenado en el receptáculo seminal o en la bolsa copulatriz (Seikizawa et al., 2013).
|
|
|
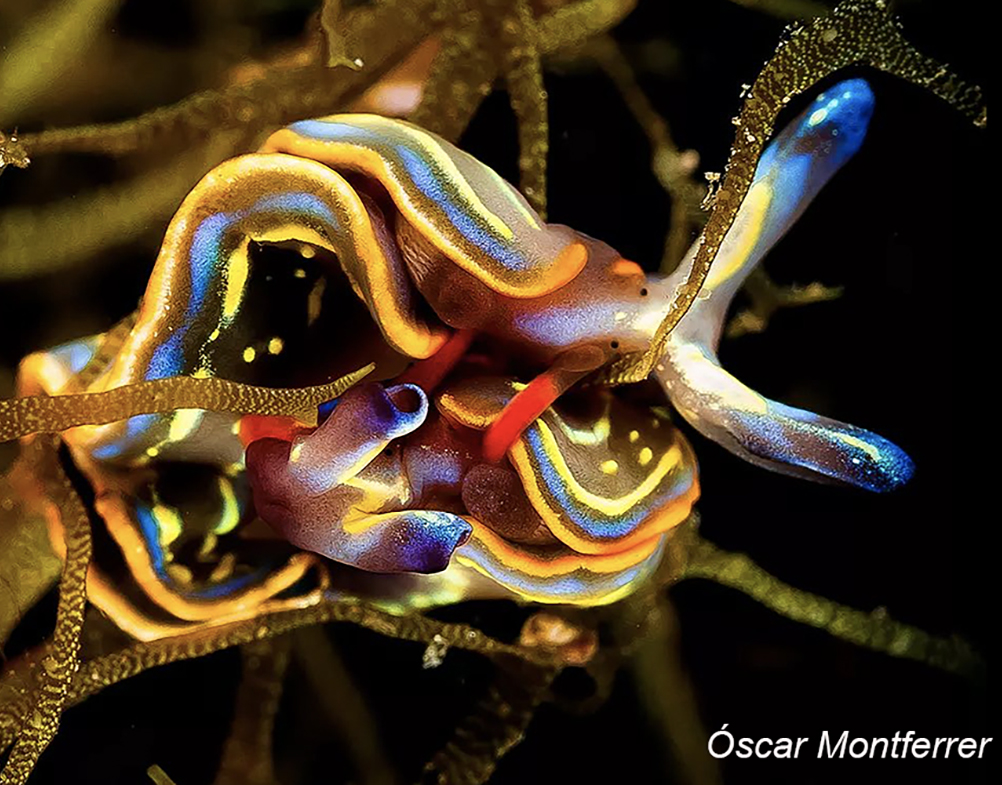
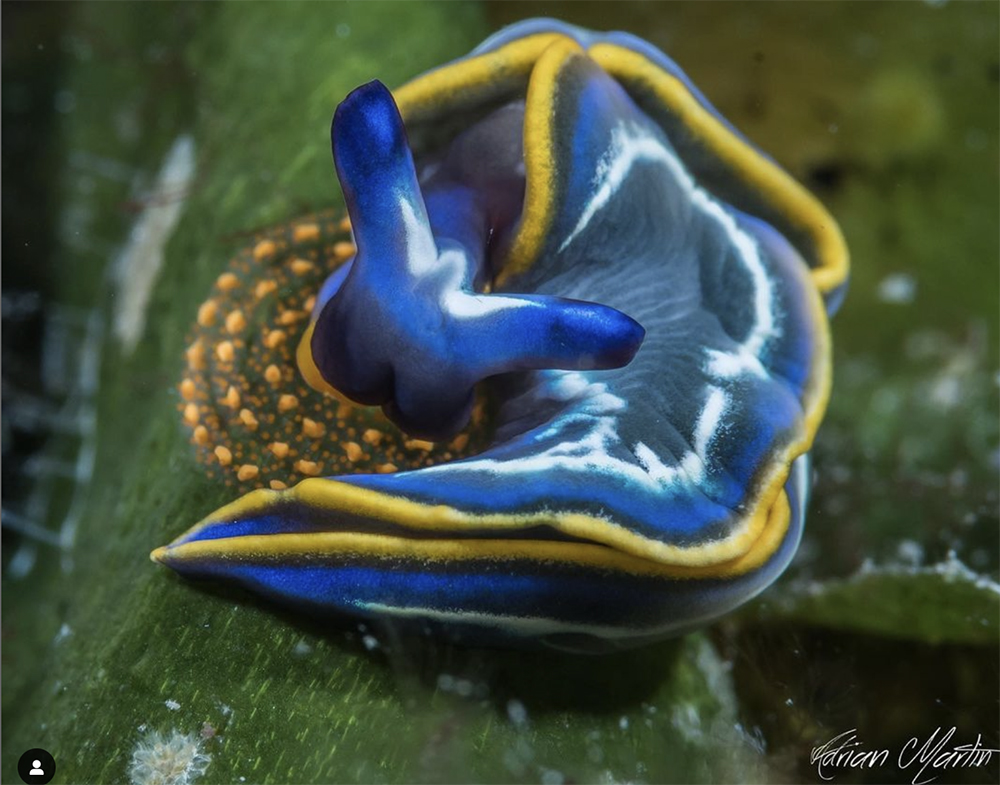
Dentro de los sacoglosos hay especies con fecundación hipodérmica, presentando el pene espinas copulatorias para poder perforar la pared del cuerpo del otro individuo.
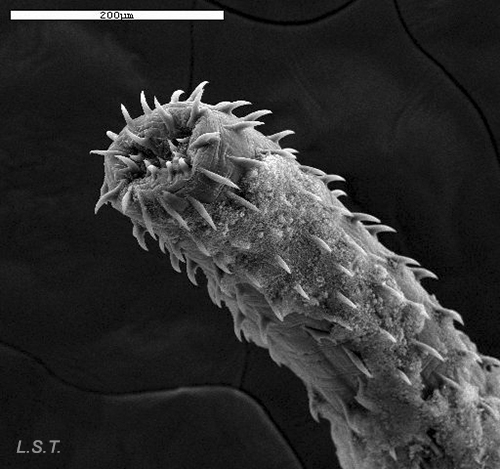
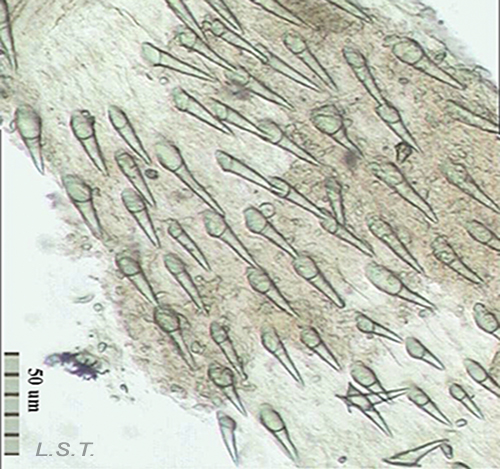
En algunas especies, el pene presenta pequeñas espinas orientadas hacia atrás, como se observa en la fotografía inferior, correspondiente al doridido Tyrannodoris europaea. Estas espinas permiten que el órgano se ancle a la vagina del otro ejemplar durante la cópula, lo que ayuda a evitar que posibles turbulencias separen a los individuos.
|
|
|
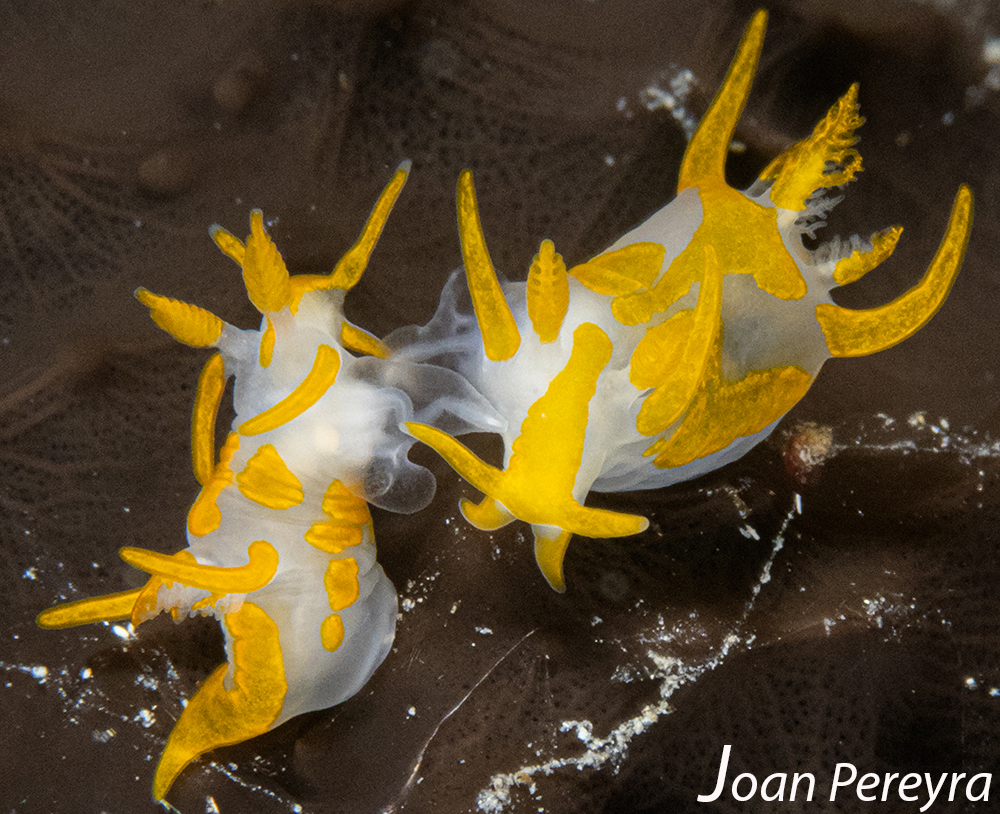
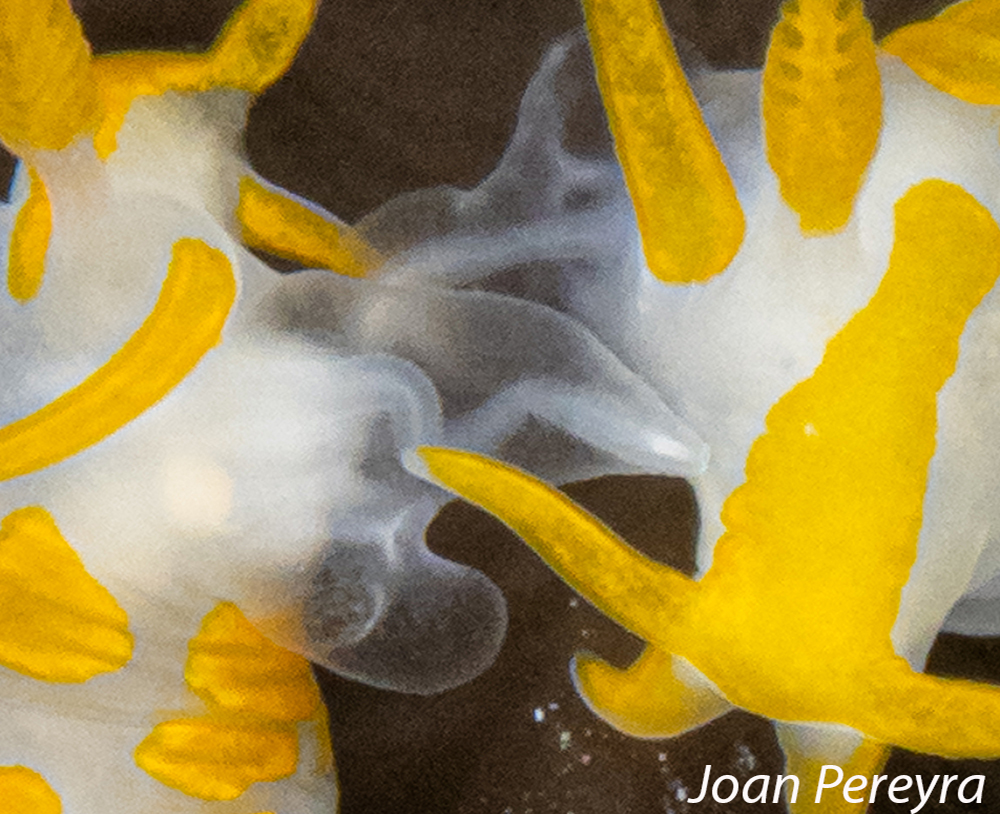
El intercambio de esperma se realiza simultáneamente y éste se recoge, generalmente, en dos órganos de almacenamiento, el receptáculo seminal y la. bolsa copulatriz. Este último es un órgano gametolítico que permite una selección femenina posterior a la cópula (Seikizawa et al., 2013). En los siguientes videos se puede ver el paso del esperma durante la cópula de Polycera aurantiomarginata y Trapania lineata.
Ejemplares de Polycera aurantiomarginata copulando
Ejemplares de Trapania lineata copulando
El hermafroditismo simultáneos supone para las especies potencialmente caníbales, como es el caso de Tyrannodoris europaea, una mayor dificultad a la hora del apareamiento. En un estudio realizado por César Megina (2000), de diez encuentros realizados en el laboratorio sólo dos acabaron en cortejo, mientras que el desenlace de siete fue la lucha.
Encuentro de dos Tyrannodoris europea en el que se puede observar como el ejemplar de la parte superior saca exterior los ´órganos copuladores.
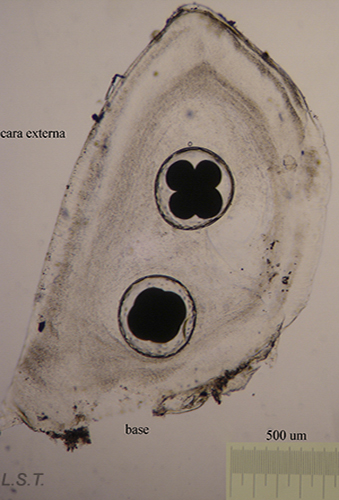
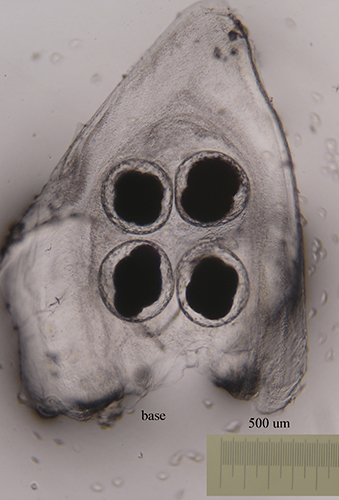
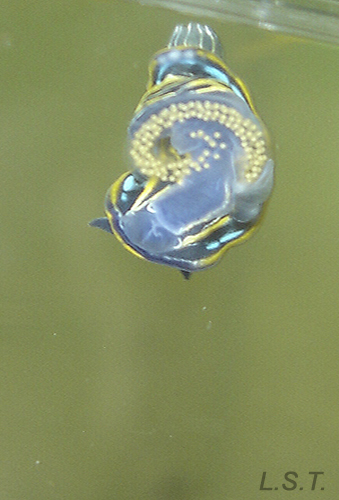
Antes de la ovoposición los huevos son fecundados y cubiertos, en la glándula femenina, por diferentes capas protectoras, para protegerlos de posibles depredadores.
|
|
|
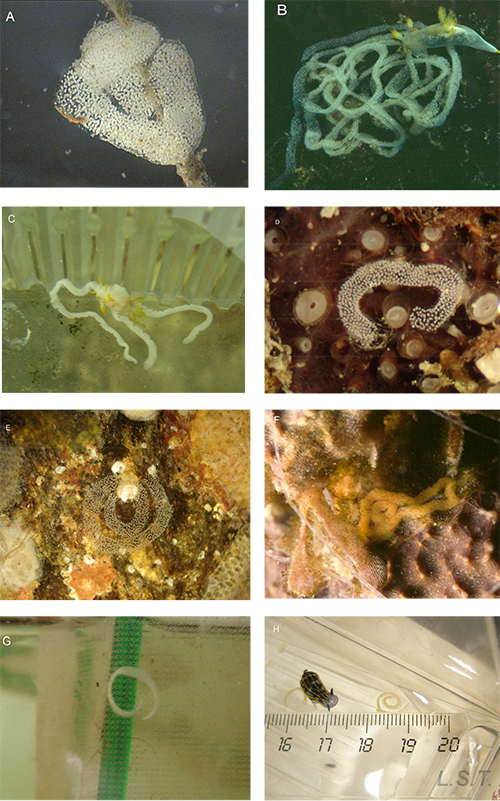
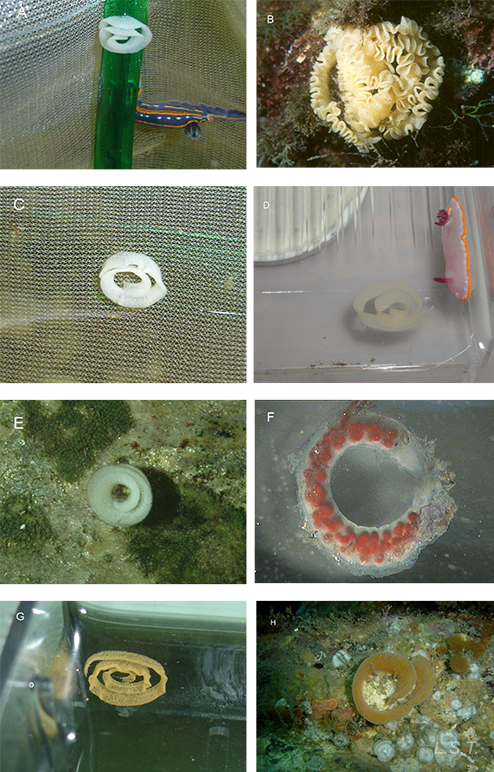
Los huevos los depositan directamente sobre el sustrato, normalmente, formando espirales y no hay ningún tipo de cuidado parental.
|
|
|
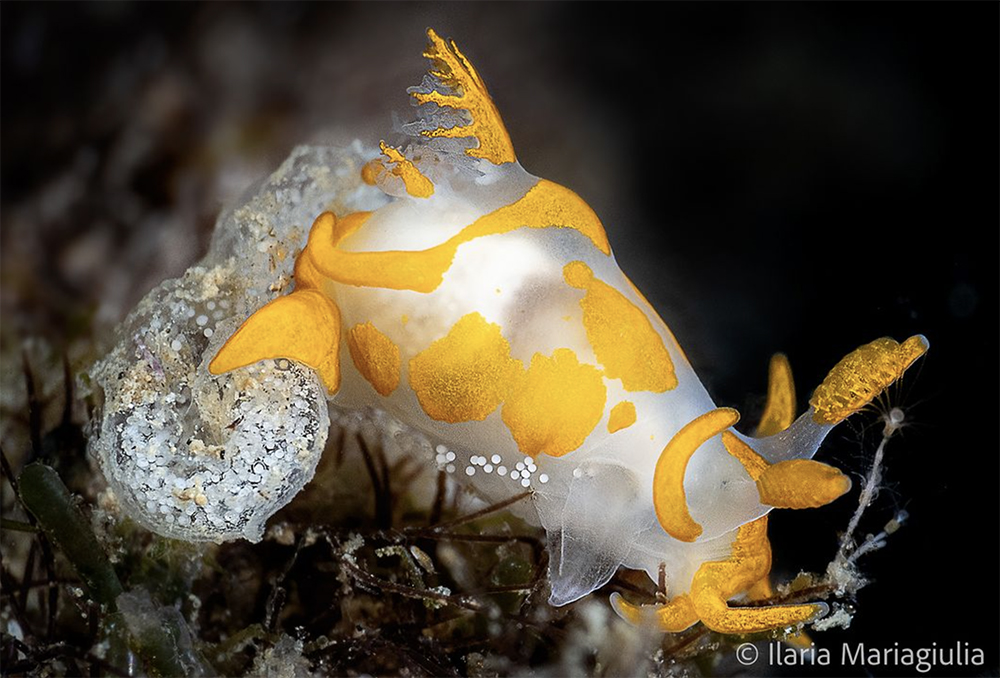
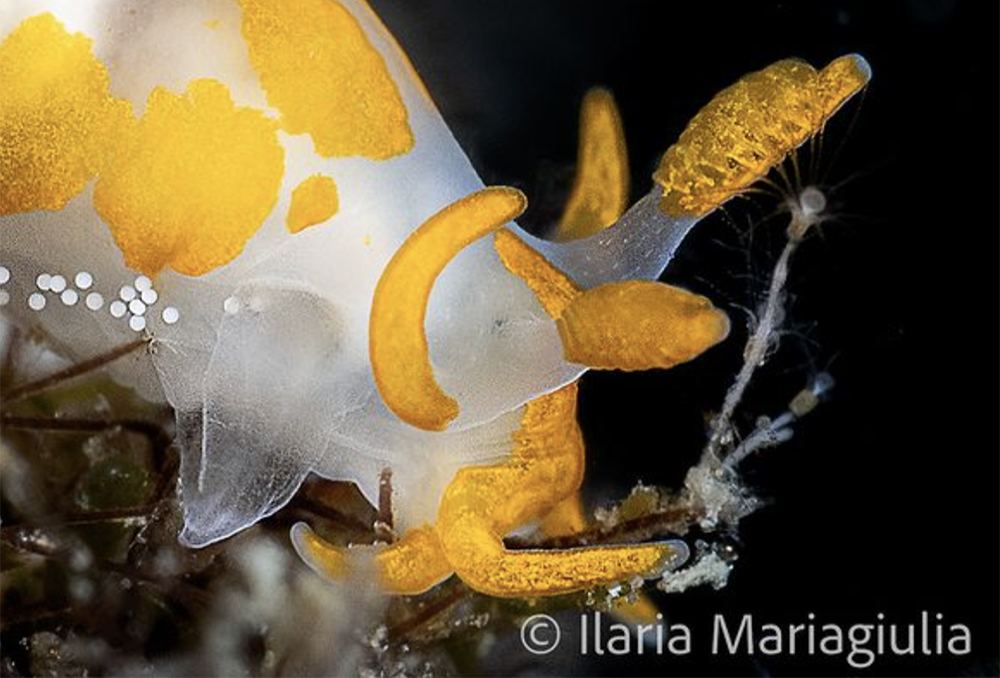
El tamaño de los huevos y el número de huevos por cápsula varía de unas especie a otras (Ver tabla). El color, tamaño y forma de la puesta varía entre especies.
|
|
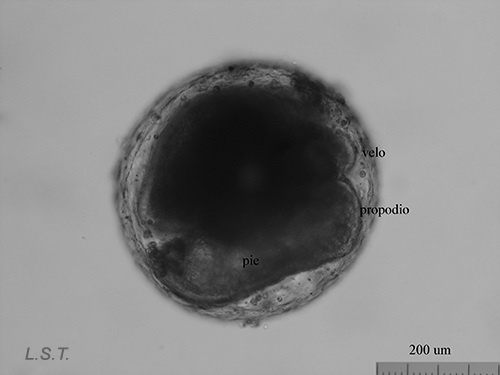
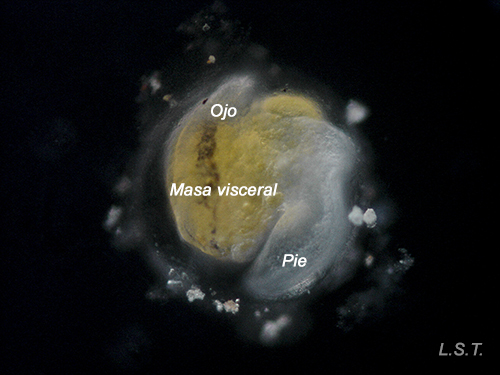
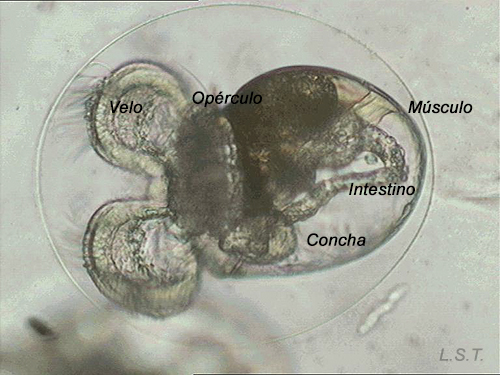
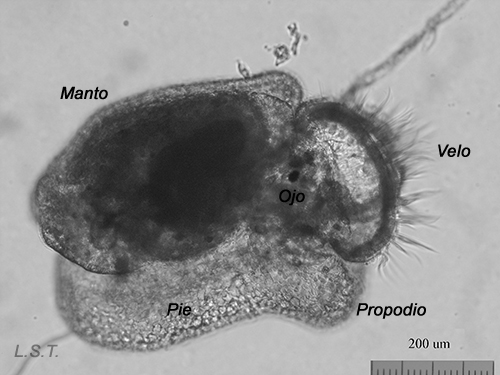
El número de huevos por puesta es variable e influye el tipo de desarrollo larvario. En las especies de tipo planctotrófico (que se alimentan de plancton), por ejemplo Trapania lineada, el número de huevos es muy elevado, de pequeño tamaño y con un menor tiempo entre la ovoposición y la eclosión. Las larvas velígeras, en este tipo de desarrollo, son casi transparentes al no tener prácticamente vitelo. Las que presentan un desarrollo de tipo lecitotrófico (se alimentan del vitelo), como Dendrodoris limbata, tienen un menor número de huevos y son de mayor tamaño. Las larvas son opacas debido al vitelo. Por último, en las especies con desarrollo directo, como Felimare villafranca, el número de huevos es muy reducido y la etapa velígera transcurre dentro del huevo.
Huevos de Dendrodoris limbata donde se pueden observar las larvas velígeras
|
|
|
|
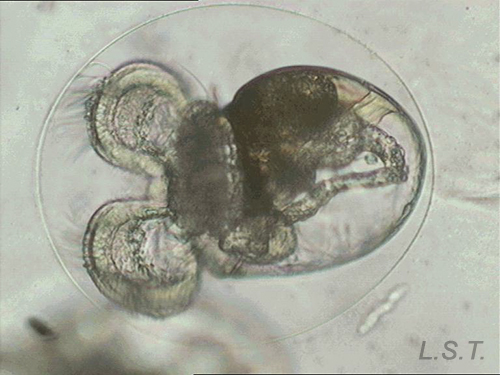
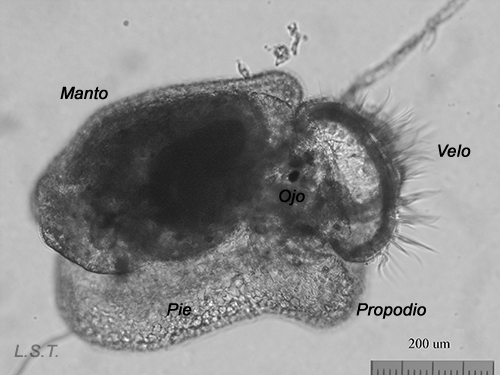
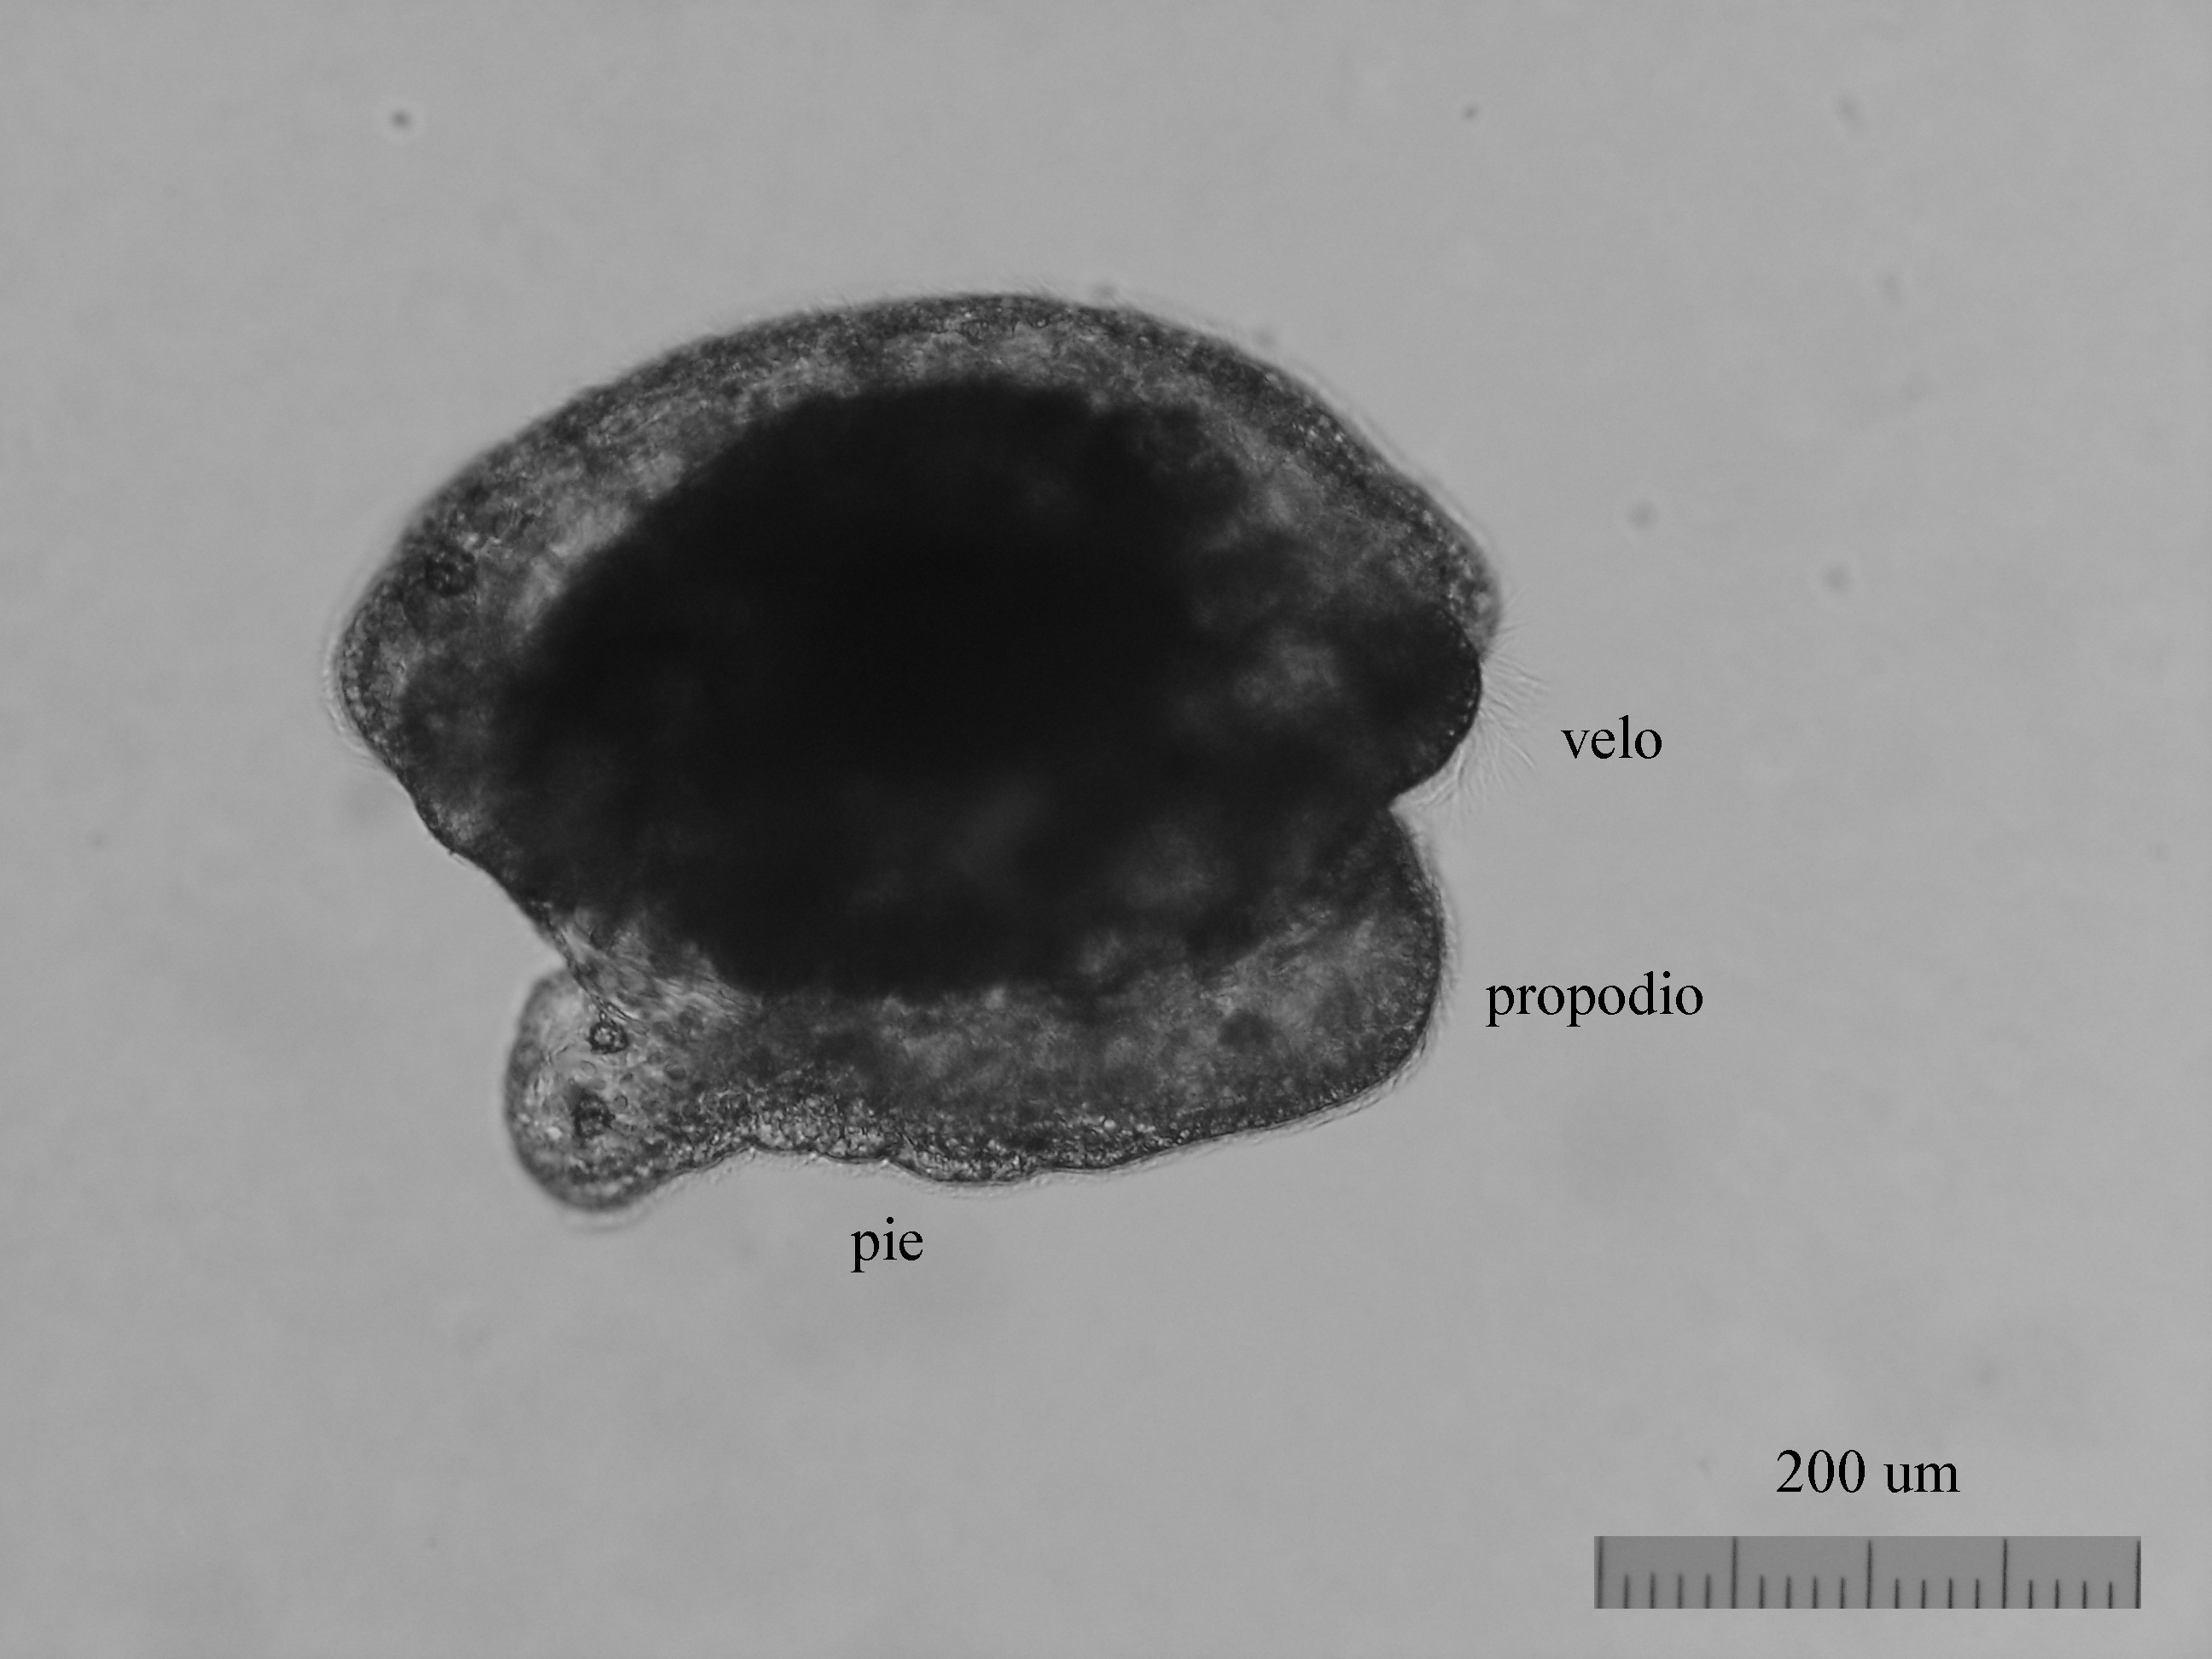
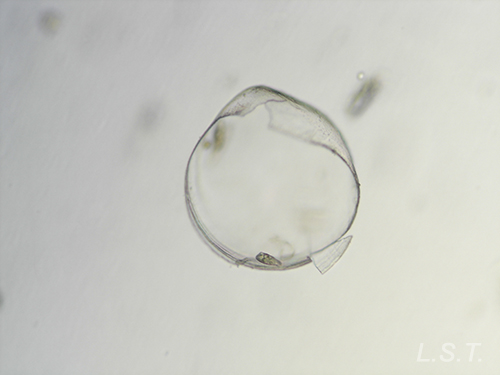
Del huevo, después de un periodo variable de unas especies a otras y que depende de factores como la temperatura ( a mayor temperatura menor tiempo), puede salir una larva nadadora denominada velígera, desarrollo planctotrófico o lecitotrófico, o un pequeño juvenil, desarrollo directo (Ver tabla). La larvas lecitotróficas presentan un velo más pequeño y pierden la concha rápidamente.
Velígera de F. bilineata (planctotrófica) rompiendo "la cáscara" del huevo.
Larva velígera lecitotrótofica de Dendrodoris limbata.
Felimare villafranca (desarrollo directo), justo antes, durante y después de abandonar el huevo.
El tipo de desarrollo, lógicamente, tiene una influencia directa en la distribución de las especies. Las de desarrollo planctotrófico pueden estar más tiempo en la columna de agua y, por tanto, recorrer grandes distancias empujadas por las corrientes, antes de que las larvas realicen la metamorfosis. Las especies lecitotróficas dependen del vitelo para su alimentación, por lo que éste limita su permanencia en el plancton, lo que disminuye su dispersión. El menor rango lo tienen las de desarrollo directo, al eclosionar directamente un juvenil de huevo.
 |
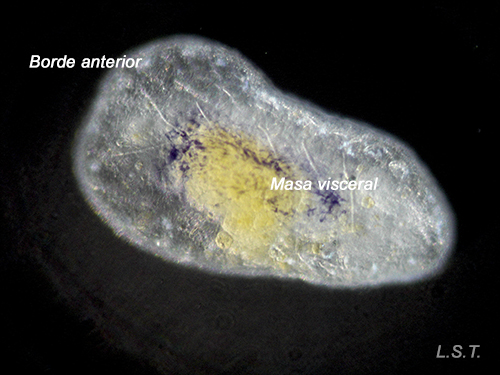 |
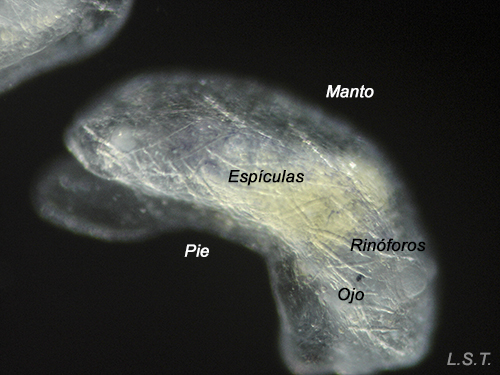
Juveniles con unos pocos días de Felimare villafranca. Se puede apreciar la incipiente coloración azul y el entramado de espículas defensivas del manto.
MÁS INFORMACIÓN
TABLA con las características de la puesta de algunos doridáceos de nuestro litoral.
| Especie | Nº de huevos por cápsula | Tamaño medio del huevo (µm) | Periodo embrionario en días | Tipo de desarrollo | Temperatura |
| F. fountandraui | 1 | 110 | 13 | 18º | |
| D. limbata | 1 | 222 | - | - | 18º |
| D. areolata | 1 | 80 | 12 | Planctotrófico | 18º |
| F. picta | 1-2 | 130 | + de 17 | 18º | |
| F. villafranca | 1 | 250 | - | Directo | 18º |
| F. purpurea | 1 | 93 | 13 | Planctotrófico | 18º |
| C. pellucida | 1 | 63 | 8 | Planctotrófico | 20º |
| F. bilineata | 1 | 65 | 11 | Planctotrófico | 20º |
| F. cantabrica | 1 | 85 | - | Planctotrófico | 22º |
| F. tricolor | 1 | 85 | 11 | Planctotrófico | 18º |
| Tayuva lilacina | 1 | 73 | 10 | Planctotrófico | 22º |
| G. rosi | 1 | 80 | 11 | Planctotrófico | 22º |
| A. banyulensis | 1 | - | - | Directo | - |
| J. onubensis | 1-2 | 63 | 9 | Planctotrófico | 22º |
| O. mediterranea | 1 | 77 | - | Planctotrófico | 22º |
| T. maculata | 1 | 100 | 11 | - | 22º |
| T. hispalenses (T. lineata) | 1 | 83 | - | Planctotrófico | 22º |
| T. lineata | 1 | - | - | - | 22º |
| C. papillata | 1 | 72 | - | Planctotrófico | 22º |
| Paradoris indecora | 1 | 180 | - | - | 22º |
FOTOGRAFÍAS
|
|
|
|
|
|
|
|
|
BIBLIOGRAFÍA
Litoral granadino
-Sánchez-Tocino, L., Ocaña, A, García-García, F. y Cervera, J.L. (2007). Descripción de las puestas y desarrollo embrionario de algu- nos Doridoidea (Mollusca: Nudibranchia) del Sur de la Península Ibérica. Iberus, 25 (1): 1-20
General
- Ballesteros, M. y Ortea, J.A. (1980). Contribución al conocimiento de los Dendrodorididae (Moluscos: Opistobranquios: Doridáceos) del litoral ibérico. I, Publicaciones Departamento de Zoología, 5: 25-37.
- Bonar, D.B. (1978). Morphogenesis at metamorphosis in opisthobranch molluscs. Pp. 177-196, in F.-S. CHIA&M.E. RICE. Settlement and metamorphosis of marine invertebrate larvae. Elsevier/North-Holland Biomedical Press, New York.
-Megina, C. (2000). Dieta y especialización trofica en Moluscos Nudibranquios. Tesis Doctoral. Universidad de Cádiz. Inédita.157 pp.
-Megina, C. y Cervera, J.L. (2003). Diet, prey selection and cannibalism in the hunter opisthobranch Roboastra europaea. Journal Molluscan Biology Association U.K., 83, 4059/1-8.
- Coelho, R. & Calado, G., (2010). Spawn and early development of NE Atlantic species of Hypselodoris (Gastropoda: Opisthobranchia). Iberus 28(2): 63–72
- Domenech, A., Avila, C. y Ballesteros, M. (2002). Spatial and temporal variability of the opisthobranch molluscs of Port LLigat bay, Catalonia, NE Spain. Journal Molluscan Studies, 68: 29-37.
- Fernández- Ovies, C. L. (1979). Puestas, desarrollo y larvas de algunos opistobranquios. Tesis Doctoral, Universidad de Oviedo. 133 pp.
- Fernández- Ovies, C. L. (1981). Contribución a la clasificación morfológica de las puestas de los opistobranquios (Mollusca: Gastropoda). Boletín del Instituto de Estudios Asturianos, Ciencias Naturales, 28: 3-12
- Gantés, H. (1962). Recherches sur quelques larves de Glossodorididae (Mollusque, Opistobranches). Bulletin de la Société des Sciences Naturelles et Physiques du Maroc, 42 : 267-277.
- Ghiselin, M.T. (1966). Reproductive function an phylogeny of opisthobranch gastropods. Malacologia 3 (3): 327-378
- Miller, M.C. 1961. Annual cycles of some Manx nudibranchs, with a discusión of the problem of migration. Journal of Animal Ecology, 31: 545-569.
- Ros, J. (1981). Desarrollo y estrategias bionómicas en los Opistobranquios. Oecologia aquatica, 5: 147-183.
- Schmekel, L. & Portmann, A. (1982). Opisthobranchia des Mittelmeeres. Springer Verlag, Germany. 410 pp.
- Sekizawa, A., Seki, S., Tokuzato, M., Shiga ,S., and Nakashima, Y. (2013). Disposable penis and its replenishment in a simultaneous hermaphrodite. Biol Lett. 9(2).
- Tchang-si, (1931). Un nouveau cas de condensation embryogényque chez un nudibranche (Doriopsis limbata Cuvier). Comptes Rendues de l´Academie dse Sciences de Paris. 192: 302-304.
- Thompson, T.E. (1967). “Direct development in a nudibranch, Cadlina laevis, with a discussion of developmental processes in Opisthobranchia”. Journal of Marine Biology, Ass U.K., 47: 1-22.
- Thompson, T.E. y Brown, G.H. (1984). Biology of Opisthobranch Molluscs. Vol. 2. Ray Society, London. 229 pp.
- Valdés, A. (1996). Revisión de la superfamilia Porodoridoidea Odhner en Franc 1968 (Mollusca: Nudibranchia) en el Océano Atlántico. Tesis Doctoral. Universidad de Oviedo. Inédita. 179 pp.
- Valdés, A.; Gosliner, T.M. & Ghiselin, M.T. (2010). Opisthobranch in The Evolution of Primary Characters in Animals. Edited by Leonard, J.L. and Cordoba-Aguilar, A. Oxford University Press.
- Wilson, N.G. (2002). Egg masses of chromodorid nudibranchs (Mollusca: Gastropoda: Opisthobranchia). Malacologia, 44(2): 289-305.
PÁGINAS WEB
LUIS SÁNCHEZ TOCINO
Citar como: Sánchez-Tocino, L. in Litoral de Granada 21/08/2026: La reproducción en los opistobranquios, https://litoraldegranada.ugr.es/el-litoral/el-litoral-sumergido/fauna/moluscos/gasteropodos/heterobranquios/opistobranquios/reproduccion/. Access --/--/----